Вътрешна морфология на клетката. Хистохимия и мембранните клетъчни органели
В предишната статия спряхме на прага на клетката — разгледахме мембраната, която я обгръща, и връзките, чрез които тя се „здрависва“ със съседите си. Сега е време да прекрачим навътре. Но тук се сблъскваме с един неочакван проблем: как изобщо да „видим“ нещо толкова абстрактно като биохимична активност? Ензимите не са оцветени. Метаболитните пътища не се различават на цвят под микроскоп. А точно те определят кой е „живият пулс“ на клетката. Отговорът на тази загадка дава една елегантна наука, наречена хистохимия.
Какво всъщност е хистохимията
Хистохимията е дисциплина която обединява биохимичните реакции, протичащи в тъканите, с техниките за оцветяване, използвани в класическата морфология, и по този начин прави видимо нещо, което иначе би останало напълно скрито от окото — не самата структура, а нейната функционална активност в точния момент на фиксация.
Методът се гради върху няколко строги принципа, всеки от които е критичен за достоверността на резултата.
Първо, трябва да се запази и обездвижи веществото, което ни интересува — чрез подходяща фиксация и обработка на материала. Тук се крие деликатен баланс: фиксацията трябва да е достатъчно мека, за да не разруши ензимната активност, но достатъчно стабилна, за да задържи структурата на място.
Второ, провежда се специфична идентификационна реакция, която трябва да завърши с неразтворим краен продукт — защото ако продуктът остане разтворим, той просто ще „изтече“ от мястото си на образуване и локализацията му ще стане невъзможна за определяне.
Трето, специфичността на хистохимичната реакция задължително се проверява чрез контроли — без тях не можем да сме сигурни, че наблюдаваният цвят действително идва от търсения ензим, а не от странична реакция.
Четвърто, оценява се точността на локализация на продукта от реакцията и чувствителността на самия метод — доколко фино можем да различим къде точно в клетката протича процесът.
Как всъщност „виждаме“ ензим, който сам по себе си е безцветен
Тук е може би най-интересната концептуална крачка в цялата хистохимия. За доказване на ензими обикновено се използват многостъпкови — двустъпкови или тристъпкови — химични реакции. В основата на прецизната цитохимична локализация стои естествената специфичност на ензима към субстрата му (или на антитялото — към неговия антиген). За светлинно-микроскопска визуализация е необходимо да се постигне цветна реакция, флуоресценция или друг маркиращ метод.
Ключовият детайл, който често убягва на пръв поглед, е следният: в повечето хистохимични реакции самият ензим никога не се визуализира директно. Вместо това се цели получаването на видим продукт от реакцията, който е резултат от каталитичната активност на ензима и по този начин косвено посочва мястото му на локализация. Първоначално получаваният неразтворим комплекс понякога е оцветен, но може да бъде и разтворим, и невидим — затова често е необходима втора стъпка, за да се получи вторичен, видим под микроскоп утаечен продукт.
Типична хистохимична реакция за хидролази и оксиредуктази може да се представи схематично по следния начин:
Ензим + Субстрат = Безцветен продукт Безцветен продукт + Оцветяващ агент = Оцветен неразтворим продукт (утайка)
Тази проста на пръв поглед двустъпкова логика стои зад десетки хистохимични методи, използвани и до днес — независимо дали доказваме активност в лизозоми, митохондрии или ендоплазмен ретикулум.
Киселата фосфатаза
Киселата фосфатаза е ензим, който катализира хидролизата на фосфатни естери в кисела среда — и е класически маркер за лизозомите, клетъчните „рециклиращи станции“, отговорни за разграждането на изхабени макромолекули и клетъчни отпадъци.
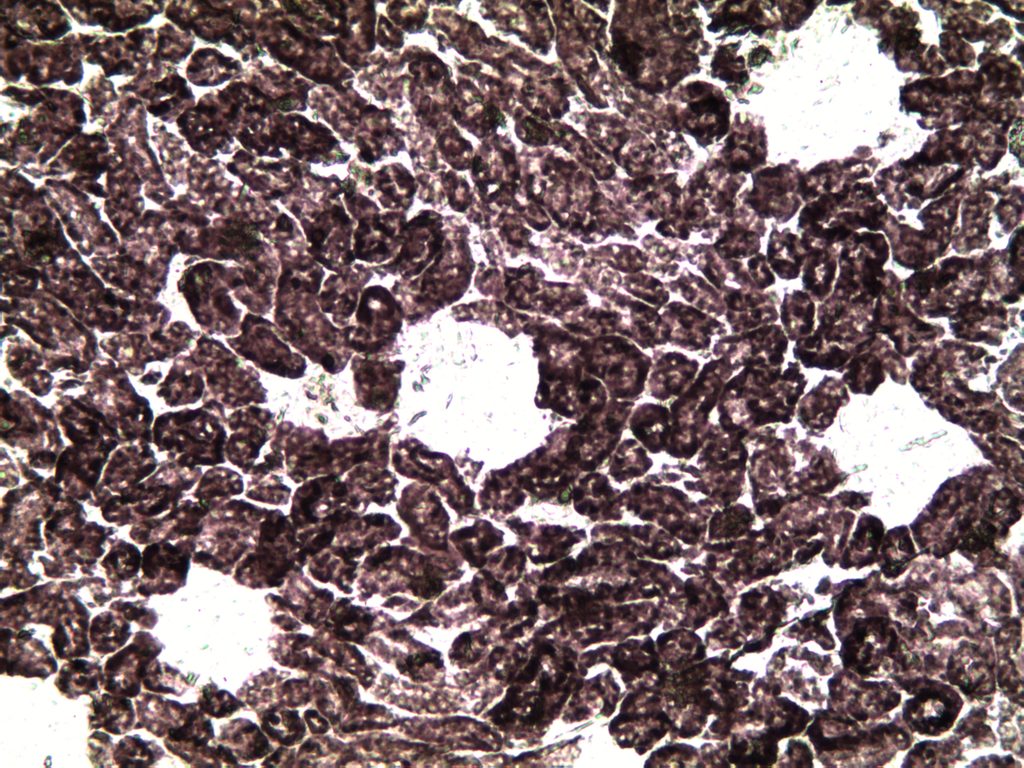
Реакцията за доказване на активността на киселата фосфатаза е тристъпкова и се извършва по метода на Гомори. Процесът започва с инкубиране на фиксирани с формалин тъканни срезове в разтвор, съдържащ натриев глицерофосфат и оловен нитрат. Ензимът хидролизира глицерофосфата, освобождавайки фосфатни йони. Тези йони на свой ред реагират с оловния нитрат, образувайки неразтворима и безцветна утайка от оловен фосфат — точно на мястото, където е протекла ензимната активност. В последната стъпка препаратите се обработват с разтвор на амониев сулфид, който реагира с оловния фосфат и дава характерна тъмнокафява до черна утайка от оловен сулфид.
Схематично реакцията изглежда така:
Кисела фосфатаза + Na-бета-глицерофосфат (2%) = Безцветен продукт Безцветен продукт + Оловен нитрат = Оловен фосфат Оловен фосфат + Амониев сулфид = Оловен сулфид
Крайният резултат под микроскоп е впечатляващ — тъмнокафяви лизозоми, съдържащи ензима кисела фосфатаза, ясно открояващи се на фона на останалата тъкан. Клинично този тип оцветяване има реално значение — повишена активност на киселата фосфатаза в определени тъкани (например простатната жлеза) се използва като биохимичен и хистохимичен маркер в диагностичната практика.
Сукцинат дехидрогеназата: следите на митохондрията
Дехидрогеназите като клас ензими имат специфична задача — те „улавят“ водород от един субстрат и го прехвърлят към друг, участвайки в централни метаболитни пътища на клетката. Методът за доказване на сукцинат дехидрогеназа, разработен от Нахлас, се основава именно на тази способност за трансфер на водород.
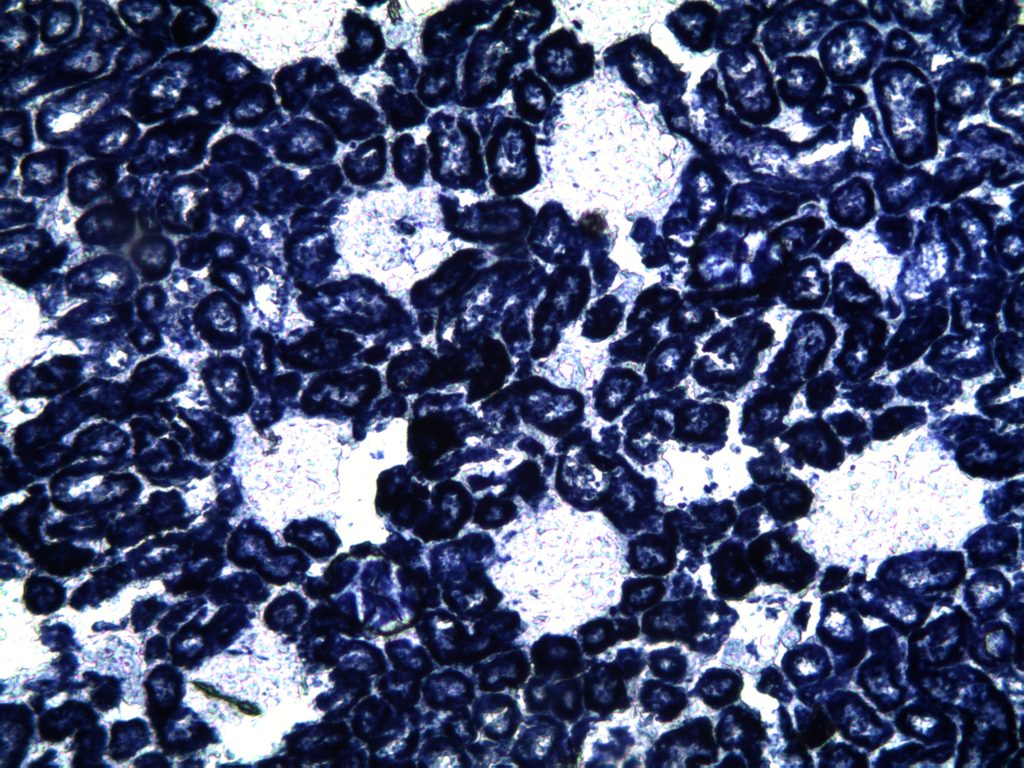
Процедурата включва инкубиране на нефиксирани тъканни срезове — за разлика от метода на Гомори, тук фиксацията би унищожила ензимната активност — в разтвор на субстрат, съдържащ светло оцветен, разтворим тетразолов акцептор на протони. Ензимът пренася водород от субстрата към тетразола, редуцирайки го до интензивно оцветен, неразтворим продукт, наречен формазан, който се утаява точно на мястото на ензимната активност.
Тук реакцията е двустъпкова:
Сукцинат дехидрогеназа + Na сукцинат (1%) = Безцветен продукт Безцветен продукт + Тетразолиево синьо = Формазан
Сукцинат дехидрогеназата окислява сукцинат до фумарат в цикъла на Кребс — един от централните метаболитни пътища, чрез които клетката извлича енергия от хранителните вещества. Резултатът от реакцията е синьо оцветен продукт, локализиран точно в митохондриите — органелите, известни неслучайно като „енергийните централи“ на клетката. Именно защото сукцинат дехидрогеназата е вграден компонент на вътрешната митохондриална мембрана и е част от дихателната верига, тя се използва като надежден маркер за митохондриална активност в изследователската практика.
Разликата между двата метода има значение
Ако сравним двата описани по-горе метода, откриваме един детайл, който лесно бихме подминали, но всъщност е показателен за цялата логика на хистохимията: методът на Гомори работи върху фиксирана тъкан, докато методът на Нахлас изисква нефиксирана тъкан. Това отразява различната „чувствителност“ на двата ензима към процеса на фиксация. Киселата фосфатаза запазва достатъчно активност дори след химическа фиксация, докато сукцинат дехидрогеназата, вградена дълбоко във вътрешната митохондриална мембрана и зависима от запазена мембранна цялост, губи функцията си при контакт с повечето фиксативи. Затова изследователят трябва предварително да познава биохимичните особености на търсения ензим, преди изобщо да избере протокол за работа — грешен избор на фиксация би „изтрил“ сигнала, преди изобщо да сме имали шанс да го видим.
Защо хистохимията остава актуална
Макар методите на Гомори и Нахлас да звучат почти като исторически анекдот от средата на XX век, логиката зад тях е далеч от остаряла. Съвременната имунохистохимия (която разгледахме в предишна статия) и молекулярните техники за in situ хибридизация са по същество наследници на същия основен принцип — вземи нещо невидимо (ензимна активност, специфична молекула, генетична последователност) и го превърни в нещо видимо чрез контролирана верига от химични реакции. Разликата е предимно в чувствителността и специфичността на съвременните методи, не в самата концептуална логика.
Именно затова хистохимията остава ценен образователен пример дори днес — тя учи бъдещите лекари и биолози на нещо по-фундаментално от конкретен протокол: как да мислят за връзката между функция и видимост, между биохимичен процес и морфологичен образ. Всеки път, когато патолог гледа оцветен срез и разчита неговите цветове като карта на биологична активност, той всъщност прилага точно тази логика — независимо дали оцветяването датира от 1950-те или е най-новата флуоресцентна сонда.
Ако Гомори и Нахлас можеха да видят днешната лаборатория, вероятно биха се изумили колко далеч е стигнала идеята, която са заложили. През последните няколко години се появи цяло ново поколение технологии, наречено пространствена транскриптомика (spatial transcriptomics) — методи, които позволяват едновременно да се картографира активността на хиляди гени и точното им местоположение в самата тъканна архитектура, без да се губи връзката с морфологията на среза, каквато класическата хистохимия винаги е пазела свещено. Още по-впечатляващо е, че изследователски екипи вече обучават модели на изкуствена интелигентност да предсказват тази пространствена генна експресия директно от обикновена H&E-оцветена микроскопска снимка — снимка, която патоанатомичните лаборатории правят рутинно от десетилетия. Паралелно с това се развиват и т.нар. фундаментни модели за дигитална патология — алгоритми, обучени на огромни бази от хистологични изображения, способни да разпознават туморни модели, да предсказват прогноза и отговор към лечение направо от сканиран препарат. Логиката, разбира се, си остава същата, която срещнахме и при метода на Гомори: превърни нещо невидимо (в случая — генетична активност) във визуален сигнал, който може да бъде интерпретиран. Разликата е, че днес „интерпретаторът“ все по-често не е само окото на патолога, а и невронна мрежа, обучена да вижда модели, недостъпни за човешкото зрение.
В следващата статия ще продължим навътре в клетката — този път към немембранните органели и цитоскелета, структурите, които ѝ дават форма, здравина и способност за движение.
Въпроси:
- За кои клетъчни органели е характерен ензимът кисела фосфатаза?
- За кои клетъчни органели е характерен ензимът сукцинатдехидрогеназа?